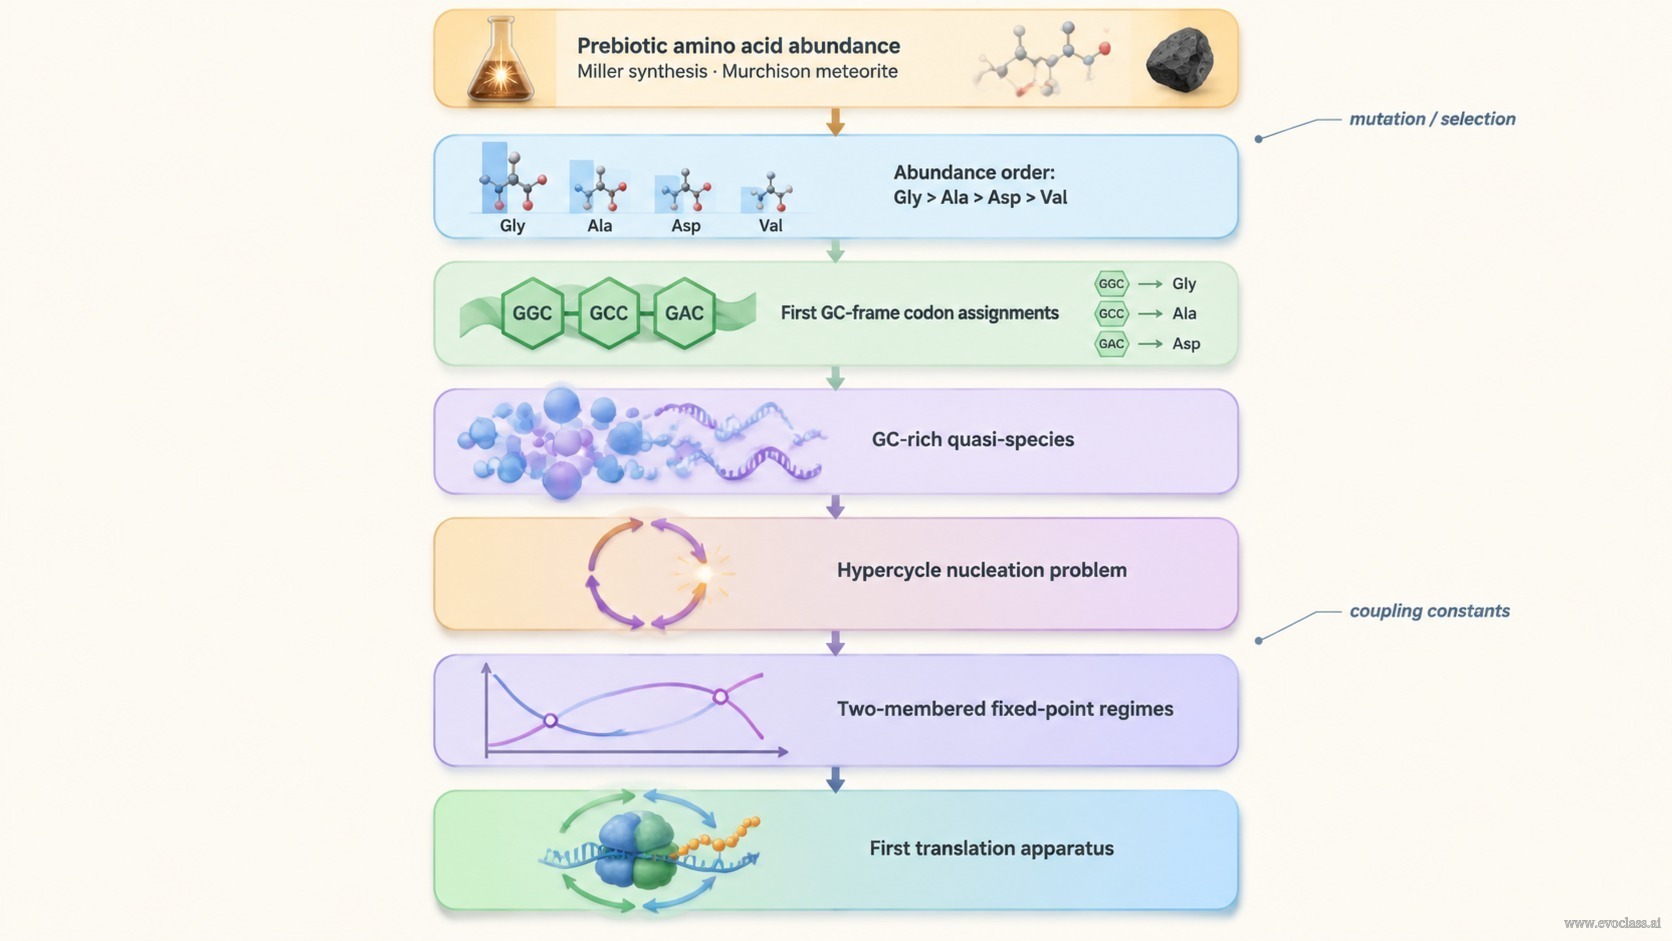
번역의 기원은 흔히 리보솜이 갑자기 조립되는 것으로 상상되곤 합니다. 이 슬라이드는 다른 경로를 택합니다. 즉, 아미노산의 전생물적 풍부함 에서 출발하여, 최초의 번역 기구가 어떤 고차원적 조직의 일부였어야 했는지 질문합니다.
전생물 화학에서 최초의 알파벳까지
모의 전생물 합성(Miller형 실험)과 Murchison 운석의 유기물 목록은 제한된 한 부류의 지방족 아미노산으로 수렴합니다. 균일한 혼합물이 아니라, 수율과 운석 내 존재비는 강하게 편향되어 있습니다. 글리신이 가장 우세하고, 그 뒤를 알라닌, 아스파르트산, 발린이 잇습니다. 이러한 편향은 최초의 유전 알파벳이 도출될 수 있었던 원료입니다.
풍부함 순서와 최초의 GC-프레임 코돈
순서 Gly > Ala > Asp > Val 는 최초의 GC-프레임 코돈 배정 순서를 정하는 데 사용됩니다. G와 C로 구성된 코돈은 가장 단순하고 가장 풍부한 아미노산에 먼저 대응되므로, 화학적 풍부함과 초기 코딩 패턴이 일치하게 됩니다. 이러한 해석에 따르면 최초의 코딩 체계는 GC 함량이 높은 것이며, 그 배정은 우연이 아니라 가용성의 결과입니다.
초순환의 핵 생성 문제
초순환은 단일 자기촉매적 복제자와 다르게 작동합니다. 하나의 복제자는 원칙적으로 단일 주형 사본에서 시작할 수 있지만, 순환적 네트워크는 그럴 수 없습니다. 고리를 닫으려면 모든 구성원이 동시에 존재해야 하기 때문입니다. 따라서 최초의 번역 기구는 고립된 분자적 발명이 아닙니다. 그것은 GC 함량이 높은 준종으로부터 점진적으로 조립되어야 하며, 돌연변이와 선택이 순환이 닫힐 때까지 그 구성 요소를 하나씩 추가하고 개선해 나가야 합니다.
2원소 초순환의 고정점
2원소 초순환의 고정점 분석은 그 결과가 상대적 결합 상수 에 달려 있음을 보여줍니다. 세 가지 질적 영역이 나타납니다. 한 구성원이 다른 구성원을 압도하는 완전한 경쟁, 초기 조건에 따라 둘 중 하나가 선택되는 경우, 그리고 각 구성원이 서로를 강화하는 상호 초순환적 안정화입니다. 마지막 영역만이 번역 결합형 기구를 지지합니다. 이는 RNA 복제와 펩타이드 합성이 경쟁하는 대신 서로를 강화하는 경우이기 때문입니다.
발명이 아닌 임계점으로서의 번역
드러나는 그림은 최초의 번역 기구가 초순환 체계의 임계점 이며, 이는 RNA 복제, 펩타이드 합성, 촉매적 폐쇄를 연결한다는 것입니다. 핵심 질문은 XI. 번역은 어떻게 시작되었는가? 위의 로드맵이 이에 답합니다. 출발점은 화학적 풍부함이며, 종착점은 돌연변이, 선택, 충분한 결합을 통해 도달하는 자기 강화적 순환입니다.
전생물적 아미노산과 최초의 번역 기구단계적 로드맵은 원시 아미노산의 풍부함(Miller형 합성 및 Murchison 운석 데이터)을 최초의 번역 기구와 연결합니다. 풍부함 순서 Gly > Ala > Asp > Val, 최초의 GC-프레임 코돈 배정, GC 함량이 높은 준종, 초순환의 핵 생성 문제, 2원소 순환의 고정점 영역을 거쳐, RNA 복제·펩타이드 합성·촉매적 폐쇄로 결합된 번역 기구에서 끝납니다.